来源:BioArt
撰文 | 咸姐
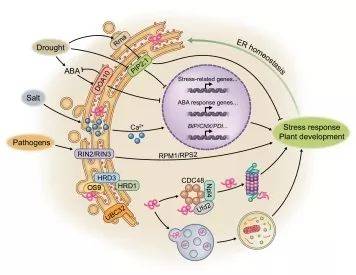
分泌蛋白(如激素)和膜蛋白(如转运蛋白)在核糖体中合成后进入内质网,然后通过折叠和各种其他修饰如蛋白质水解、N-键糖基化、二硫键形成等而成为成熟蛋白质,只有完成这所有的过程的蛋白质才能被送入高尔基体进行下一步修饰。因此,内质网作为蛋白质的“制造工厂”,必须通过严格的产品质量控制来维持细胞内稳态。
当应激源(如缺血过程中的缺氧和葡萄糖剥夺,或病毒造成的蛋白质超载等)阻断内质网功能时,内质网上就会产生过量的未成熟的缺陷蛋白,这种情况就称为内质网应激(ER Stress)。如果这种情况持续一段时间,内质网就会发出凋亡信号,导致细胞凋亡。因此,为了应对内质网应激,目前研究发现,细胞内激活了三种主要的防御机制,统称为内质网上的未折叠蛋白反应(UPRER),旨在减少缺陷蛋白。第一个防御机制是阻止核糖体中进一步的蛋白质合成;第二是通过内质网上驻留的分子伴侣的动员来修复缺陷蛋白;第三是内质网中缺陷蛋白质的消除和降解,称为内质网相关性降解(ER-associated degradation, ERAD)【1,2】。
最初,科学家们在酵母中分析UPR时发现肌醇需求酶1(inositol-requiring enzyme 1, Ire1),该酶作为内质网应激传感器,通过内质网外转移来传递信息。直到1998年在哺乳动物中发现Ire1同源基因(IRE1)后,哺乳动物体内UPR开始受到广泛关注,随后,另外两个哺乳动物特有的内质网应激传感器ATF6和PERK被发现,这些跨膜蛋白在未折叠蛋白过量时可以向细胞核发出信号,引起细胞反应,从而导致蛋白质合成的减少和内质网容量的扩大【3】,如果此时内质网应激没有被解决,研究发现,UPR也可以通过影响几个MAPK信号介导的细胞命运决定来触发细胞死亡或衰老【4】。在揭示细胞应对内质网应激的机制的同时,其与多种疾病的关系也被陆续报道。越来越多的研究发现内质网应激与神经退行性疾病如阿尔兹海默症、帕金森等密切相关,同时内质网应激与糖尿病、代谢综合症和癌症也有着重要的关系,内质网应激引起的细胞功能障碍和疾病发病机制的相关研究呈现持续爆发式地增长【5】。
虽然许多研究都集中在UPR及其与其他应激反应途径的相互作用上,但很少有人知道细胞微环境的变化如何影响内质网应激下细胞命运的决定或衰老过程的。在机体健康和衰老的背景下,细胞应激反应通路的复杂性和重要性使得蛋白质质量控制机制成为人们理解某些疾病的核心,但是其在哺乳动物中的研究仍有很大限制。此外,现存的高通量研究方法几乎总是涉及使用来自恶性细胞生长的细胞系,这些细胞系往往表现出对应激反应途径的严重失调,从而阻碍了人们对非癌变条件下生物功能的理解。
近日,来自美国加州大学伯克利分校的Andrew Dillin教授团队在Cell上在线发表题为The Hyaluronidase, TMEM2, Promotes ER Homeostasis and Longevity Independent of the UPRER的文章,以核型稳定的人成纤维细胞为研究对象,使用混合的CRISPR文库进行全基因组功能敲除筛选,以识别影响细胞对内质网应激反应的新候选基因和通路,并在秀丽线虫中验证其普遍性,从而揭示了一条不依赖于UPRER的促进内质网稳态、抑制衰老的新通路,为细胞内应对内质网应激反应提供了新的机制。
本文的研究人员用可维持细胞增殖的浓度的衣霉素处理人成纤维细胞,以通过抑制N-键糖基化产生内质网应激,随后使用混合的sgRNA库进行全基因组CRISPR敲除筛选(图1),以期筛选出可以使细胞对内质网应激敏感的基因。结果分析显示,除了已知的内质网应激通路成员如IRE1和PERK等,最显著的使细胞对内质网应激敏感的基因还包括了跨膜蛋白2(TMEM2),TMEM2定位于细胞膜,在细胞外基质中起着透明质酸酶的作用,而其之前的研究并未涉及内质网应激,因而成为本文进一步研究的首选对象。

图1 筛选流程图
为了证明TMEM2在内质网应激调控中的作用,本文研究人员实验发现,TMEM2敲除的细胞对细胞内质网应激的抵抗显著降低,而其过表达足以改善内质网应激抵抗。由于TMEM2是一个细胞表面透明质酸酶(HAase),它可以将细胞外基质中的高分子量透明质酸(HMW-HA)和中等分子量透明质酸(MMW-HA)降解为低分子量透明质酸(LMW-HA),进一步实验发现,TMEM2敲除的细胞表现出的对内质网应激的敏感是由于LMW-HA产物的减少导致的。
进一步地,为了探究TMEM2的内质网应激抵抗作用是否是通过UPRER的三种途径产生的,本文研究者将UPRER每一途径的功能分别减弱以分析细胞内质网应激抵抗的变化,结果显示,TMEM2在内质网应激抗性中起着独特的作用,与PERK1、ATF6和IRE1的典型通路均无关,而是通过细胞表面受体CD44(透明质酸的可能受体)和ERK/p38 MAPK信号通路介导的。
已知动物应对内质网应激的能力会随着年龄的增长而下降,而内质网应激反应的过度激活可以改善这些缺陷,从而延长寿命,那么TMEM2是否也参与这个过程呢?本文研究人员随后采用秀丽线虫为模型,将人源TMEM2(hTMEM2)在线虫内表达,检测TMEM2对衰老的影响,结果显示,秀丽线虫中hTMEM2的异常表达保护线虫免受内质网应激损伤,延长了其寿命并增加了其对病原菌的抵抗能力,同时发现hTMEM2参与调节线虫的天然免疫,并且与细胞实验一致,这种作用是不依赖于经典的UPRER途径的,而是依赖于ERK同源基因mpk-1和p38同源基因pmk-1。
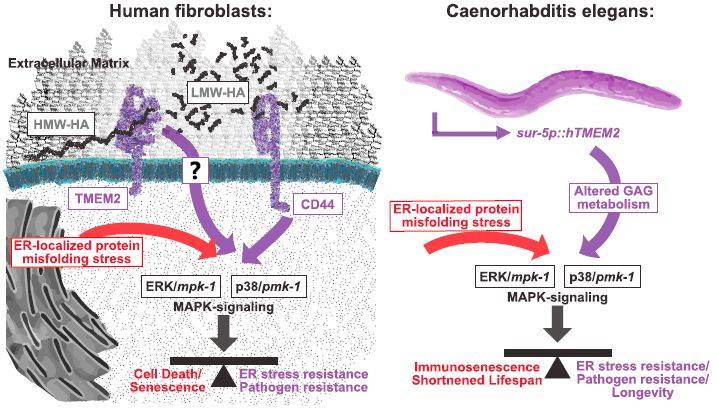
综上所述,本文首次发现TMEM2通过酶解使得HMW-HA分解为LMW-HA,从而改变细胞外基质中糖胺聚糖透明质酸的组成,进而调节内质网应激抵抗,而小代谢物LMW-HA的增加最终通过细胞表面受体CD44介导的p38/ERK MAPK信号的改变,以改变内质网应激下细胞命运的决定。由此揭示了与衰老相关的内质网应激水平和细胞外基质成分变化如何影响某些疾病的新的发病机制,为治疗干预提供了新思路。
原文链接:
https://doi.org/10.1016/j.cell.2019.10.018
参考文献
1. Ron D, Walter P. Signal integration in the endoplasmic reticulum unfolded protein response. Nat. Rev. Mol. Cell Biol., 8, 519–529 (2007).
2. Tsai B, Ye Y, Rapoport TA. Retro-translocation of proteins from the endoplasmic reticulum into the cytosol. Nat. Rev. Mol. Cell Biol., 3, 246–255 (2002).
3. Gardner, B.M., Pincus, D., Gotthardt, K. et al. Endoplasmic reticulum stress sensing in the unfolded protein response. Cold Spring Harb. Perspect. Biol. 2013, 5, a013169.
4. Darling, N.J., Cook, S.J. The role of MAPK signalling pathways in the response to endoplasmic reticulum stress. 2014, Biochim. Biophys. Acta 1843, 2150–2163.
5. Kaneko M, et al. ER Stress and Disease: Toward Prevention and Treatment. Biol Pharm Bull. 2017, 40 (9), 1337-1343.
来源:BioGossip BioArt
原文链接:http://mp.weixin.qq.com/s?__biz=MzA3MzQyNjY1MQ==&mid=2652478884&idx=3&sn=3262da1fd4cd268b8b6a12e58e75876c&chksm=84e20e10b39587068dbcdd47e49b146e3f80fc8684ae5274af1e4bd55ca292b4f99e9877fbb2&scene=27#wechat_redirect
版权声明:除非特别注明,本站所载内容来源于互联网、微信公众号等公开渠道,不代表本站观点,仅供参考、交流、公益传播之目的。转载的稿件版权归原作者或机构所有,如有侵权,请联系删除。
电话:(010)86409582
邮箱:kejie@scimall.org.cn