来源:BioArt
编者按
T细胞在适应性免疫中重要作用是毋庸置疑的,在T细胞表面的T细胞受体(TCR)与CD3形成复合物才能实现信号转导的功能,最终引发免疫应答,抵御病原的入侵。然而,过去的20年,尽管人们对TCR胞外可变区如何识别各种抗原进行了很深入的研究,但作为细胞免疫基础科学问题之一的TCR-CD3复合物组装以及信号转导的结构基础仍然未知。哈尔滨工业大学的黄志伟教授团队与北京大学高宁教授团队合作,在面临诸多团队激烈竞争的情况下通过改进了许多关键的实验方法,首次展示了完整的人源TCR-CD3复合物原子分辨率结构,大大促进了我们对TCR-CD3组装机制的理解,为TCR激活机制提供了重要线索,该工作代表了细胞适应性免疫的分子机理研究的一个重要里程碑。有鉴于此,BioArt特别邀请到了西湖大学施一公教授、哈佛医学院吴皓教授、德国科隆大学柴继杰教授以及中科院生化细胞所许琛琦研究员从不同角度对相关工作进行了专业点评,以飨读者!
T细胞是脊椎动物适应性免疫系统的关键细胞,在病毒感染、癌症以及自体免疫疾病中起着关键作用。T细胞免疫反应包括由TCR(T cell receptor)首先识别抗原呈递细胞(APC)上结合了抗原肽的MHC复合物(pMHC),然后TCR通过其结合的共受体(CD3)将抗原信号传递到CD3的ζ亚基的胞内ITAM区域,进而启动T细胞内级联免疫信号通路杀死病原感染细胞或肿瘤细胞。
大多数成熟T细胞(约95%)的TCR由通过二硫键相连的α和β两条异二聚体肽链组成,TCRα/β的可变区(Vα和Vβ)负责识别抗原信号,TCRα/β与含有γ/ε、δ/ε和ζ/ζ六个亚基进行信号传递的共受体CD3组成TCR-CD3受体复合物,该复合物决定着T细胞的发育、激活以及对病原的免疫反应。在过去的二十年中,人们对TCR胞外可变区如何识别各种抗原进行了很深入的研究,但作为细胞免疫基础科学问题之一的TCR-CD3复合物组装以及信号转导的结构基础仍然未知。
2019年8月28日,哈尔滨工业大学黄志伟教授与北京大学高宁教授联合在Nature上以长文形式发表了题为Structural basis of assembly of the human TCR-CD3 complex(人T细胞受体-共受体复合物组装的结构基础)的研究文章。该研究首次解析了人T细胞受体-共受体(TCR-CD3)复合物(包含全部8个亚基)的高分辨率冷冻电镜结构,通过对结构分析,揭示了TCR和CD3亚基在膜外侧以及膜内识别、组装成功能复合物的分子机制,从而回答了免疫领域关于T细胞受体结构的基础科学问题,而且对解析T细胞活化的分子机制具有重要的科学意义,同时也为开发基于T细胞受体的免疫疗法提供关键结构基础。
本研究中研究人员首先对不同人的细胞库进行目的TCR的筛选确定研究的对象,接着通过化学交联办法纯化蛋白复合物样品,接着通过冷冻电镜解析了第一个来源于人的TCRα/β-CD3复合物的3.7 Å的高分辨率结构(图1)。该TCR-CD3复合物结构包含完整的胞外结构域(ECD)以及所有跨膜区域。该TCR-CD3复合物结构显示其由1:1:1:1的TCRα/β:CD3γ/ε:CD3δ/ε:CD3ζ/ζ八聚体亚基组装形成,这与之前的生化研究结果一致。
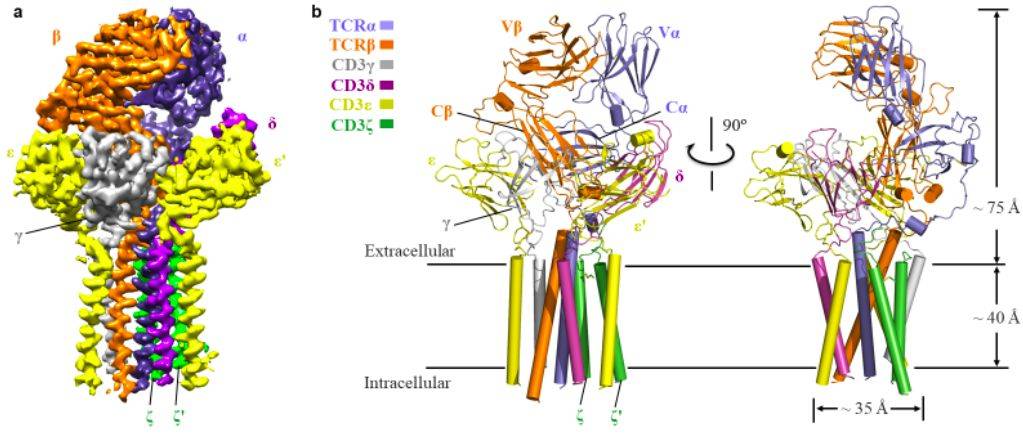
图1、TCR-CD3复合物的整体结构图
TCR-CD3复合物的胞外区域由TCRα/β的恒定区以及连接胞外和膜内的连接肽结合CD3的γ/ε和δ/ε两个二聚体模块组装而成,TCR-CD3复合物胞外区域的组装在接近细胞膜的外侧形成类三次对称的结构,TCRβ亚基的恒定区位于该三次对称结构的中心位置。CD3膜内部分由ζ/ζ亚基的两个跨膜螺旋和γ/ε以及δ/ε亚基的跨膜螺旋结合形成桶状构象。TCR-CD3复合物膜内组装由TCRα/β的两个跨膜螺旋通过疏水和电荷作用插入CD3筒状跨膜结构中形成(图2)。所以,TCR-CD3各亚基近膜侧的连接肽以及膜内区域的强相互作用对整个复合物的组装起着关键作用。有趣的是,将该复合物结构与结合有pMHC的TCRα/β胞外的区域结构比较发现pMHC的结合并没有引起TCRα/β结构的明显变化。
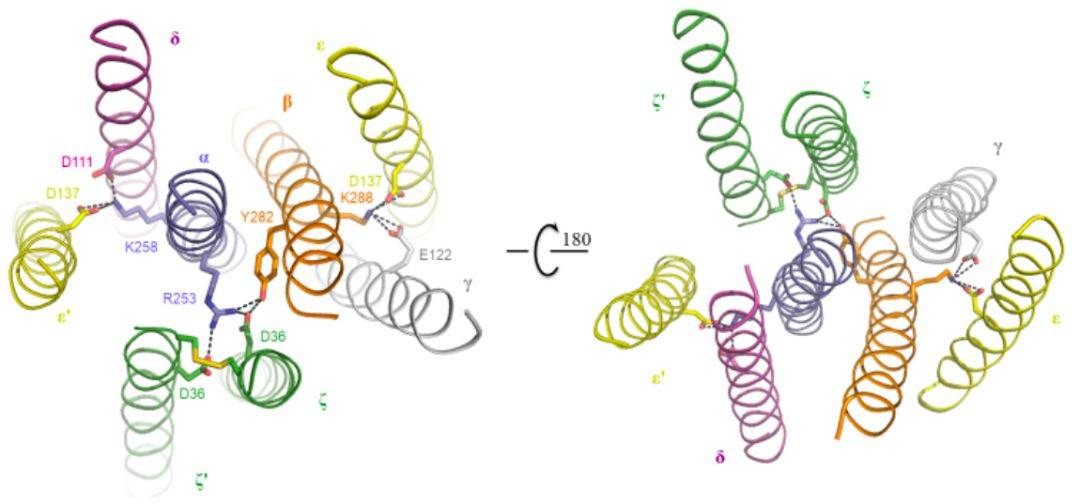
图2、TCR-CD3复合物细胞膜内组装的细节图
据悉,文章审稿人对该项研究给予了高度评价:“该研究工作代表了细胞适应性免疫的分子机理研究的一个重要里程碑。通过阐明第一个在膜上组装的T细胞受体和其CD3共受体的结构,极大地增加了我们对T细胞识别抗原反应的激活机制的理解。”(“The work represents a major milestone in the study of the molecular basis of cell-mediated, adaptive immune responses. By elucidating the first structure of the membrane assembly between a clonotypic T cell receptor and its CD3 co-receptor, this work greatly enhances our understanding of the “triggering” mechanism which allows T cells to recognize and respond to aberrant peptide antigens.”)
据悉,哈工大生命学院博士生董德、硕士生林建铨以及北京大学博士生郑吕钦为该论文的并列第一作者。哈工大生命学院黄志伟教授和北京大学高宁教授为本研究论文的共同通讯作者。哈工大生命学院技术员张百灵、博士后朱玉威等参与该研究的部分工作。
专家点评
施一公(西湖大学校长,中国科学院院士)
This is a remarkable achievement from an exceptionally talented investigator. This work, accomplised by Professor Zhiwei Huang from Harbin Institute of Technology, represents an important milestone in the quest to understand the molecular basis of cell-mediated adaptive immune response. This accomplishment also settles a fierce competition among many structural biology laboratories worldwide towards an age-old research project of fundamental biological importance.
专家点评

傅天民(哈佛医学院,吴皓实验室博士后)、吴皓 (哈佛医学院教授,美国国家科学院院士)
眼见为实:终于看到TCR-CD3的高分辨率三维结构
免疫系统也许是生物抵御周围世界中的各种病原最重要的屏障,高等生物的免疫系统可以分为天然免疫和适应性免疫。适应性免疫不但有错综复杂的特异性,还可以产生免疫记忆,是发展疫苗的基础,为人类防治传染性疾病起了重要作用。T淋巴细胞是适应性免疫系统的重要成员。在T细胞表面有一类特征性的受体蛋白,称之为T细胞受体(TCR)。T细胞受体能够识别主要组织相容性复合物(major histocompatibility complex, MHC)呈递的抗原(MHC-antigen complex),依此识别病原,引发免疫应答,抵御病原入侵。TCR由α亚基和β亚基组成,它们具有相似的三级结构,包括胞外结构域和单次跨膜结构域,其中,胞外结构域用于识别抗原。但TCR的两个亚基都没有胞内的结构域,必须和CD3形成复合物才能达成信号转导的功能。CD3 本身是一个六元复合物,由CD3ε/γ异源二聚体, CD3ε/δ异源二聚体, 和CD3ζ/ζ同源二聚体组成。大量的生化和结构生物学研究表明,TCR-CD3复合物中,TCRα/β, CD3ε/γ, CD3ε/δ, CD3ζ/ζ的化学计量为1:1:1:1。 自1984年TCR被克隆以来,获取TCR高分变率的三级结构就是免疫领域的重大挑战。多年来,TCR胞外结构域、TCR胞外结构域和抗原以及MHC的复合物、CD3胞外域、CD3ζ/ζ二聚体等相继得到解析。2014年,TCR-CD3的低分辨率结构也被报道。但是,TCR-CD3复合物的组装和激活机制尚未完全得到阐释。
2019年8月29日,哈尔滨工业大学生命科学院的黄志伟和北京大学的高宁课题组在Nature杂志发表了题为Structural basis of assembly of the human TCR –CD3 complex的研究文章,报道了他们解析的完整TCR-CD3复合物,分辨率为3.7 Å。为了制备高质量的样品,该课题组在HEK293F细胞中筛选来自不同人cDNA文库的单个TCR-CD3亚基的表达,通过优化表达策略和纯化条件,他们成功制备了适于结构研究的复合物样品。在制备冷冻样品时,他们遇到了复合物解离问题。为结决这一问题,该课题组还用了戊二醛交联来稳定TCR-CD3复合物。
TCR-CD3整体结构很像一个冰激凌蛋筒。正如之前的研究,TCR和CD3的胞外结构域形成了紧密的相互作用网。而这一复合物结构最具吸引力的地方在于跨膜区。跨膜区由8段螺旋组成一个紧密的螺旋束。其中,TCRα/β, CD3ε/γ, CD3ε/δ, CD3ζ/ζ的跨膜区通过小侧链疏水氨基酸相互作用形成异源或同源二聚体。与之相对的是,TCRα/β的跨膜区与CD3各个亚基之间形成了盐键,这也与前人的研究相吻合。总之,这个高分辨率的TCR-CD3结构完整呈现了这一重要免疫分子的结构细节,为进一步理解其活化机制奠定了基础。
该研究代表了理解TCR组装和激活的重要一步。展望未来,在这项研究的基础上许多问题可以进一步探讨。例如,在配体存在下, TCR-CD3复合物如何发生构象变化,还有TCR-CD3复合物如何组装成高阶复合物来实现信号转导。
专家点评
柴继杰(德国科隆大学Alexander von Humboldt讲座教授、马普植物育种研究所研究员)
T细胞受体(TCR)与其在抗原呈递细胞(APC)表面上的抗原肽-主要组织相容性复合物(pMHC)的相互作用激活抗原特异性T细胞应答。TCR复合物识别外来抗原肽后,将信号转导至细胞核,从而快速启动T细胞的免疫应答。TCR信号传导机制对于我们理解适应性免疫以及改造治疗性T细胞具有重要意义。TCR-CD3复合物是由可变TCR受体的α和β链以及与之互作的共受体CD3信号传导模块γ/ε,δ/ε和ζ/ζ组成的八聚体复合物。二十年来,已经有一些关于TCR-CD3受体亚基的排列,组成TCR-CD3复合物的各亚基组成和TCR激活机制的模型被提出,然而TCR信号传导机制的认识还远不清楚。最近在Nature发表的一项研究中,来自哈尔滨工业大学的黄志伟和其实验室与北京大学高宁实验室合作,解析了高分辨率TCR-CD3完整复合物电镜结构。该项工作首次展示了完整TCR-CD3复合物原子分辨率结构,大大促进了我们对TCR-CD3组装机制的理解,为TCR激活机制提供了重要线索。
研究者首先通过建立一个漂亮的筛选系统重组出具有生物活性的TCR-CD3复合物,进一步筛选出化学交联剂戊二醛对TCR-CD3复合物进行交联,然后利用冷冻电子显微镜(cryo-EM)使获得3.7埃分辨率的复合物结构。高分辨率冷冻电镜结构揭示了TCR-CD3复合物的1:1:1:1各二聚体模块的比例,各个亚基间如何相互识别,以及TCT-CD3复合物的组装机制。重要的是,该结构显示连接肽区和跨膜区对于TCR-CD3复合物的组装至关重要。在跨膜区段内形成的离子相互作用排除了跨膜螺旋相对滑动以从而活化TCR的可能性。与TCR细胞外结构域的结构比较发现pMHC结合在TCR复合物中并不诱导TCR-CD3的显著构象变化。有趣的是,虽然激活抗体OKT3和pMHC-CD4激活相同的TCR途径,但激活抗体OKT3在与TCR-CD3复合物的相互作用中占据完全不同的位置,提出了抗体如何触发TCR信号传导的问题。OKT3似乎通过同时和CD3γ/ε 以及TCRα/β结合稳定TCR-CD3复合物 。
解析原子分辨率TCR-CD3完整复合物结构是T细胞免疫领域中的重要里程碑。该结构不仅对理解TCR活化具有重要的理论意义,同时为改造TCR-CD3复合物从而用于治疗性T细胞提供重要线索。体外TCR-CD3完整复合物的重组为进一步解析TCR信号传导制开辟了新途径。预计未来可以采用类似的策略来重组含有共受体CD4 / CD8的TCR复合物甚至重组TCR信号转导体(原文中称为LAT信号转导体)。对这些这些蛋白质复合物的生化和结构生物学研究无疑将大大促进我们理解T细胞免疫应答的分子机制。
专家点评
许琛琦(中科院生化与细胞研究所研究员)
TCR自从在上个世纪八十年代被Mark Davis和Tak Mak克隆后,一直是免疫学家关注的焦点。TCR负责识别抗原,将胞外抗原结合信号跨膜转换成胞内赖氨酸磷酸化信号,为T细胞提供主刺激信号。在CD28提供的共刺激的帮助下,TCR信号能够使得T细胞活化并获得效应功能。在只有TCR信号的情况下,T细胞会进入anergy状态,丧失功能。肿瘤微环境中往往只有TCR刺激信号而缺乏CD28信号,所以有一种假说认为肿瘤微环境中T细胞的无能化就是由于单独的TCR刺激所引起的。
TCR由四个亚基组成。TCRαβ亚基负责识别抗原,但是不能往内传递信号;三个信号亚基CD3εδ,εγ,ζζ含有Immunoreceptor Tyrosine-based Activation Motif(ITAM),可以被磷酸化后招募下游信号分子ZAP70,再活化LAT等一系列信号分子。这四个亚基在TCR中的比例一直有所争议。大部分免疫学家认为是TCRαβ:CD3εδ:CD3εγ:CD3ζζ是1:1:1:1的构成,但是也有的免疫学家认为是2:1:1:1的构成。黄志伟课题组所解析的结构解决了这个长期的争议,支持1:1:1:1的构成。另一个关键的科学问题是这4个亚基是如何组装的。TCR复合体的组装分为3步,先是TCRαβ亚基和CD3εδ亚基组装,然后CD3ε/γ亚基加入,最后CD3ζζ亚基加入。前期有大量的生化实验研究了各个亚基之间的相互作用。在溶液中的生化实验认为各个亚基之间的胞外Ig-like区相互作用很弱。另外还有文章报导胞外区的connecting peptide区域也对组装有贡献,譬如CD3亚基的tetracystine motif。Kai Wucherpfennig实验室利用体外翻译系统发现了TCRαβ亚基和CD3亚基之间主要依赖跨膜区的静电相互作用组装。有趣的是这种静电相互作用是α或β上的1个碱性残基对应CD3的2个酸性残基。这种跨膜区1:2静电相互作用模式也适用于多种其它活化型免疫受体。这次报导的结构证明了跨膜区1:2的静电相互作用,同时发现了新的结合位点:1)胞外区:TCRαβ基和CD3εδ亚基,CD3εγ亚基的胞外区各自有明显的相互作用,并且CD3εδ亚基和CD3εγ亚基的胞外区也有明显的接触面;2)跨膜区:除了静电相互作用外,还能够看到很多疏水相互作用。每条CD3ζ链的跨膜区分别和CD3εδ,和CD3εγ跨膜结合,形成了一个未闭合的桶装结构。TCRαβ的跨膜区正好插在桶中。这些新的结构信息对理解TCR的组装提供了全面的信息,然而尚不能解释各个亚基如何严格遵守3步组装顺序这一问题。
这篇论文还探讨了抗原结合是否引起结构形变这一问题(Conformational change模型)。将在pMHC-TCRαβ的晶体结构和TCR-CD3结构重叠后发现没有明显的结构形变。需要指出的是pMHC和TCR分别位于不同的细胞膜上,两种膜蛋白之间的相互作用会涉及一系列物理因素,譬如机械力。该论文的结构和前期的结构都没有将TCR的配体固定在一个界面上,而是在溶液中让受体和配体自由结合。Cheng Zhu实验用单分子技术已经证明膜固定的TCR-pMHC结合与溶液中的TCR-pMHC结合有明显的差别。因此TCR是否存在抗原诱导的结构形变这一问题还有待进一步研究。除了Conformational change模型外,TCR的活化模型还包括Kinetic segregation,Serial engagement,Kinetic proofreading。期待进一步的结构研究能为我们带来更多的信息来理解TCR活化。
总体来说,TCR复合体的结构解析是个里程碑式的贡献。下一步能否将TCR放到天然的膜脂环境中去,理解磷脂和胆固醇这些脂分子对结构的调控?目前已知TCRβ的跨膜区和胆固醇结合,CD3ε,ζ胞内区与酸性磷脂结合。这些相互作用都能调控TCR的结构与功能。因此在天然膜系统中研究TCR的结构会是下一个里程碑。
原文链接:
https://doi.org/10.1038/s41586-019-1537-0
来源:BioGossip BioArt
原文链接:http://mp.weixin.qq.com/s?__biz=MzA3MzQyNjY1MQ==&mid=2652474591&idx=1&sn=198be9b193134b6e98c51f86c042fd60&chksm=84e21f6bb395967dfdf1197f2f7d56c030e7fa30e4953f956037bf66641a1b5156298af06c43&scene=27#wechat_redirect
版权声明:除非特别注明,本站所载内容来源于互联网、微信公众号等公开渠道,不代表本站观点,仅供参考、交流、公益传播之目的。转载的稿件版权归原作者或机构所有,如有侵权,请联系删除。
电话:(010)86409582
邮箱:kejie@scimall.org.cn