来源:BioArt植物
水是影响农业生产的主要环境因子,一方面,气候变化导致干旱频发,影响了植物的生长发育,造成作物产量损失;另一方面,淹水会影响根系的生长发育和吸水能力,引起植物萎蔫。因此,水分缺失或过量均会对农业造成负面影响并导致巨大的经济损失。从农艺学角度上讲,灌溉和土壤排水是弥补降水不足和抵抗涝害的有效措施,但是对耐旱或耐涝作物品种的选育更是改善植物水分利用状况的关键途径。因此,育种者们致力于通过植物物候学手段保护农作物的生殖生长,或针对叶片的生长及蒸腾特性进行遗传改良【1】。但是作为植物水分吸收功能的履行者,植物根系的性状并没有得到育种者的足够关注,主要原因是根系随环境的变化较大而且原位检测难度较大。
近日,来自法国(Université de Montpellier)的研究人员在Nature Plants发表了题为Root architecture and hydraulics converge for acclimation to changing water availability的文章,从根系水力结构特征、根系可塑性及水分感知信号等角度探讨了根系水力结构在植物适应不断变化的水分可用性中的作用机制并提出了未来的研究方向。
水力结构特征
根系通过生长和分支产生复杂的根系系统结构(root system architecture,RSA),从而实现其扎根和养分吸收的功能。RSA特征主要包括主根长度、次生根密度、向重力性定点角等,并且受到各种激素的调节。研究表明,深根以及良好的根系生长方向是具有干旱适应性的优势根型特征,因为这两种表型有利于植物吸收未被探索到的水资源,并且已经在水稻和拟南芥中通过遗传学手段验证【2】。除了根系生长,植物的水分吸收还取决于根系的内在水分传输能力即根系水力。一般情况下,水分会首先通过快速从土壤传输到根系中柱细胞,然后通过木质部运输到地上部,其中水通道蛋白在细胞间的水分转运中发挥关键作用。其他根系水力相关的因子,如外皮和内胚层细胞壁木质化和栓化在水分的质外体运输过程中发挥作用。此外,通过拟南芥重组种群的QTL分析和全基因组关联研究(GWAS)发现了HCR1(HYDRAULIC CONDUCTIVITY OF ROOT 1)基因和XND1(XYLEM NAC DOMAIN 1)转录因子在调控根系水流导度中的作用【3】,这再次强调了根系水力学特征在植物对水分胁迫适应性中的重要性。
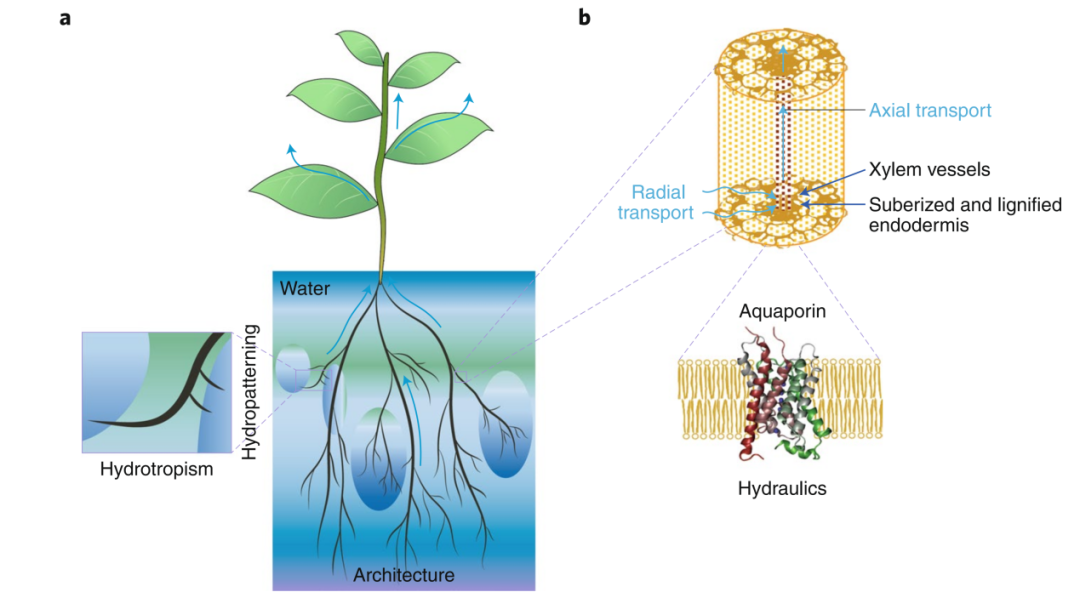
The water uptake capacity of a root system is determined by both its architecture and hydraulics
值得一提的是,对根系水分吸收能力的全面理解需综合考虑根系结构和水力学特征,即根系水力结构(root hydraulic architecture)。该研究指出,尽管目前有一些工作通过建模等方式匹配根系结构和水分运输特性,但仍缺乏足够的实验数据支撑,而作为一个衡量植物性能的综合特性,根系水力结构特征在未来应当与植物育种相关研究相结合。
水分调控的根系可塑性
根系结构和水力特征都具有很高的可塑性,以整合来自土壤异质环境的水信号,并不断调整水资源获取的策略。首先,水分可用性对根系生长和水力特征具有短期和长期的影响并与水分胁迫程度相关。比如,适度缺水可以促进初生根生长和侧根形成,而严重缺水则会产生抑制作用。研究还表明这种响应的敏感程度还与根系生长阶段和空间位置有关。此外,根系水力也受到水分缺失的调节并具有特定物种或品种特性。比如,玉米根部水通道蛋白可以通过昼夜节律调控地上部需水量的日变化【4】。而长期干旱则可以通过内皮层栓化或干扰木质部分化影响根系水力。此外,水资源可用性的局部异质性问题也对根系水力结构有重要影响,因为这种类型的缺水可以在植物没有任何水分胁迫情况下发生,而局部的水分变化可以改变根系生长方向或侧根形成。最近的研究还描述了一种干分支(xerobranching)现象,反映了当根系穿过一个充满空气的土壤大孔时,侧根因为感受到瞬时缺水而抑制侧根形成【5】。该研究指出,未来应更多在真实干燥土壤中研究根系生长过程中的相互作用及水分吸收的调控机制。
相比之下,淹水会降低大多数植物物种的根系水流导度,而长久淹水则会对根系结构和RSA产生影响。比如,在某些湿地物种中,淹水造成的缺氧环境会促进根被皮中木栓质和木质素沉积,从而抑制氧气从根部向土壤的扩散【6】。此外,水稻等物种中形成的通气组织以促进根系通气,并受到乙烯、ROS和生长素等调控。但是目前对淹水植物中的根系水力结构的研究并未受到关注。
根系的水分感知
根系对水分可用性的感知及其下游信号传导过程对植物的水分胁迫适应性至关重要,并且该过程涉及到ROS和钙信号相关事件。最近一项研究通过建模的方法发现,根系的水分利用与生长有关,因为在根系生长区的整个径向平面可以上维持局部水势梯度,而非生长区则不存在【7】,这为进一步探索“水分感知”机制奠定了基础。之后的研究表明,局部缺水作用于SUMO(small ubiquitin-like modifier)蛋白以增强植物生长素应答因子ARF7的类泛素化,继而抑制根系诱导转录因子LBD16(LATERAL ORGAN BOUNDARIES DOMAIN16)的表达【8】。但是对于干分支现象则可能涉及到ABA积累对生长素依赖性根系分支的拮抗。
相比之下,根系对淹水的感知依赖于完全不同的机制,这种感知与乙烯反应因子(ERF)同源的class VII转录因子相关,并且这种转录因子会被氧气分解。因此,在淹水条件下,这些ERF-VII因子可以引发核心厌氧转录反应,并且这种机制受到乙烯、钾离子等多种激素和环境因子的调节。也有研究指出,ERF-VII转录因子还通过抑制初生根的倾斜放映和促进不定根的伸长反应而在植物根系的缺氧生长反应中发挥作用【9】。
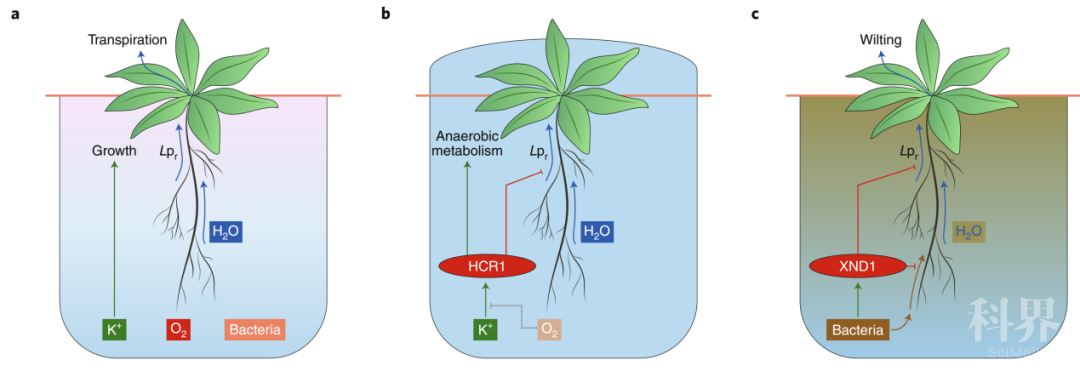
总之,该研究强调了由根系生长、水力特征和水分感知信号组成的功能网络,其中根系生长和水力特征组成的根系水力结构是根系对水分变化适应性的关键特征。该研究指出,未来研究应揭示植物根系优化水分吸收和维持水分状况的机制,这对于作物改良至关重要。
来源:bioartplants BioArt植物
原文链接:https://mp.weixin.qq.com/s?__biz=MzU3ODY3MDM0NA==&mid=2247496764&idx=1&sn=159700621c20227e3d3d9c417ba6d390&chksm=fd736e5bca04e74d8a30d78f1a299b82fd1462bf30c9b44aeb016824e28720d8fbd4e6ba21be#rd
版权声明:除非特别注明,本站所载内容来源于互联网、微信公众号等公开渠道,不代表本站观点,仅供参考、交流、公益传播之目的。转载的稿件版权归原作者或机构所有,如有侵权,请联系删除。
电话:(010)86409582
邮箱:kejie@scimall.org.cn